5 分钟
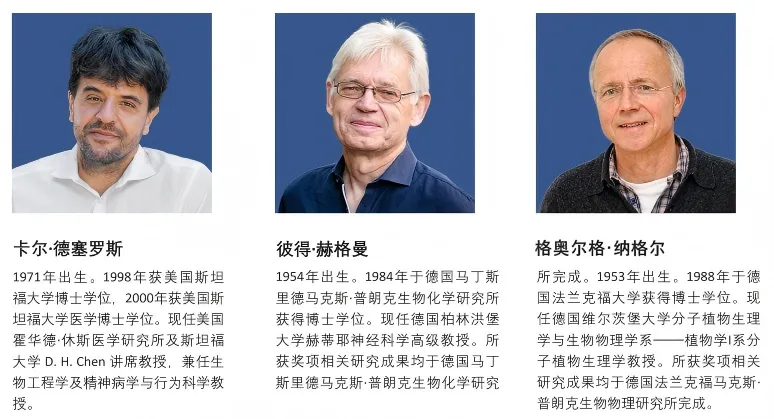
理解大脑如何形成记忆、情感及行为,长期以来一直是科研人员的心愿。卡尔·德赛罗斯、彼得·赫格曼与格奥尔格·纳格尔因在光遗传学领域的突破性发现而荣获2026年度诺贝尔生理学或医学奖;从单细胞绿藻里找到的光敏蛋白,点亮了人类解析大脑奥秘的全新道路,这束来自微观生命的光,终将照进无数神经与精神疾病患者的未来。
© 诺贝尔生理学或医学奖委员会。插图:马蒂亚斯·卡伦
大脑,这个仅重约1.3公斤的器官,何以承载童年记忆、白日梦与创造力?它如何成为喜悦、爱与嫉妒的根源?又何以调控心跳节奏、呼吸节律以及睡眠周期?
自古以来,科学家们便致力于破解这一生物学之谜。进入二十世纪后,他们成功鉴定出大脑中调控各类生理功能的特定区域。这一发现提供了极具价值的认知基础,但当时可用的研究方法仍相对粗糙,尚无法证实某类特定神经细胞直接引发某种特定感觉或行为,始终无法在神经活动与行为反应之间建立起确凿的因果证据链。因此,彼时人类勾勒出的大脑图景像犹如一张模糊照片,处处留着待解的问号与未探明的空白。
弗朗西斯·克里克(1962年诺贝尔奖获得者)便是那些渴望拥有更精密工具来探索大脑中异常复杂的神经细胞网络的研究者之一。在1953年DNA双螺旋结构的突破性发现问世数十年后,他开始探究人类意识的底层机制,并构想出在活体组织中激活单个神经细胞的方法。
大脑神经细胞中的信号传递速度极快。为了匹配这一速度,克里克得出了一个结论:用光来调控可能是一种理想选择。如果分子生物学家能够以某种方式操控神经细胞,使其对光产生反应,他们或许就能控制神经活动。克里克也承认,他的想法听起来似乎有些不切实际,但未必没有实现的可能。
克里克对未来的愿景如今已成为现实。
2026年10月5日,诺贝尔奖揭晓。借助光技术,研究人员现已能够在大脑中开启或关闭单个神经回路;他们不仅能唤醒记忆、激发情感、驱动行为,还能探究参与各类精神及神经系统疾病的神经元类型。光遗传学技术正从根本上重塑我们对大脑的认知,同时为神经系统如何与身体其他部位(如心脏与肠道)的细胞相互作用提供了重要见解。
一、分子与细胞层面的工作原理
健康神经元的动作电位依赖膜上离子通道对 Na⁺、K⁺、Ca²⁺、Cl⁻ 等的选择性通透。光遗传学并不发明新的“神经语言”,而是给目标细胞装上一类 光敏执行器(opsin):光照改变视蛋白构象,离子流随之改变,膜电位去极化或超极化,从而触发或压制放电。目前临床与转化研究中最常用的是两类工具,机制截然不同。
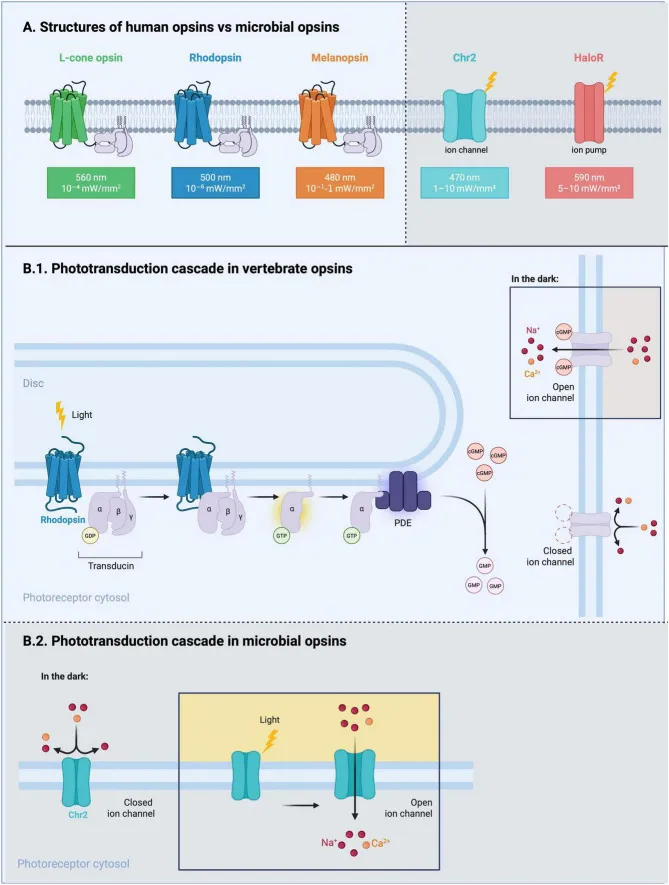
图片引用:Bica MT, Cehajic-Kapetanovic J. Advantages of human opsins in optogenetic visual restoration
微生物视蛋白(如 ChR2、ChrimsonR、CatCh、ReaChR 等)本身就是光门控离子通道或离子泵。光子被视黄醛发色团吸收后,通道直接开放,阳离子内流引起去极化(兴奋),或如卤视紫红质(halorhodopsin)通过 Cl⁻ 转运产生抑制。这一过程是 单分子耦联,不依赖细胞内第二信使级联,因而速度快(毫秒级)、时间保真度高,适合精确刺激;代价是缺乏级联放大,往往需要较高辐照度才能有效驱动——经典通道视紫红质常需约 ≥10¹⁵ photons·cm⁻²·s⁻¹ 量级,显著高于日常室内光。
脊椎动物/人源视蛋白(视紫红质、视锥蛋白、黑视蛋白 melanopsin 等)是 G 蛋白偶联受体(GPCR)。光激活后经转导蛋白、磷酸二酯酶等放大,最终改变 cGMP 或下游离子通道状态。其优势是 内在信号放大,可在接近房间光水平(约 10¹¹–10¹² photons·cm⁻²·s⁻¹)工作,并具有类似天然视觉的漂白—适应特性;但动力学、靶细胞中内源级联是否完整、以及色基再生是否依赖 RPE 视觉循环,都会影响临床设计。
微生物视蛋白还有一个便于转化的特点:发色团在蛋白内完成 all-trans ↔ 13-cis 热弛豫循环,不依赖视网膜色素上皮(RPE)的视觉循环,因此即使 RPE 和感光细胞外节已严重破坏,仍可反复开关。工程化改造则持续改善光谱、动力学与灵敏度:红移变体(如 ChrimsonR、ReaChR)可在更长波长工作以降低短波光毒性;高灵敏、快开关变体(如 ChRmine、MCO 系列、f-ChR2 等)则试图在更低光强下支持高频刺激。
操作上,完整系统通常包含四层:执行器(视蛋白)、基因递送(以 AAV 为主,启动子决定细胞类型)、光照硬件(光纤、LED 阵列、护目镜或环境光本身),以及在中枢适应症中越来越重要的 传感—闭环控制。转化研究强调:能被光引出反应,并不等于具备治疗意义;真正走向临床,必须把基因、材料、剂量学、植入力学与安全性作为一个耦合系统优化。
二、为何首先在视网膜“落地”:疾病逻辑与治疗原理
视网膜退行性疾病(如晚期视网膜色素变性 RP、Stargardt 病、部分晚期 AMD/地图样萎缩)的共同病理是 光感受器(视杆/视锥)不可逆丧失,而双极细胞、无长突细胞、水平细胞和视网膜神经节细胞(RGC)等内层回路在相当长时间内仍可相对保留。传统基因替代(如针对 RPE65 的 voretigene neparvovec)只能覆盖少数已知基因,且需要仍有可救治的感光/RPE 结构;电子视网膜假体则受电流扩散、空间分辨率和界面反应限制。
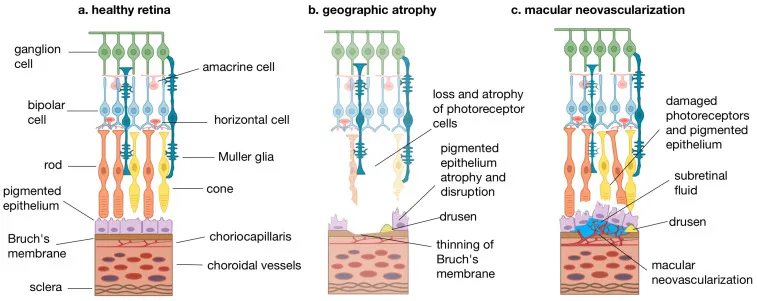
光遗传视力重建的逻辑是 绕过失活的感光细胞:用 AAV 把光敏蛋白基因送入仍存活的双极细胞或 RGC,使这些“本来不直接感光”的神经元获得光驱动的离子流,重新向视神经和大脑发送视觉相关电信号。这是一种 基因无关(gene-agnostic)策略——不修复致病突变,而重建下游感光能力,因而对突变高度异质的晚期患者更具普适性。
靶细胞选择决定“重建到哪一层计算”:靶向 ON 双极细胞可更多保留中心—周边、ON/OFF 分离等内层处理;靶向 RGC 则更直接驱动输出,但可能牺牲部分视网膜内运算,且轴突层被非选择激活时空间分辨率受限。31613 递送多采用 玻璃体内注射(IVT),操作接近常规眼科门诊路径;但人眼内界膜(ILM)远厚于小鼠,黄斑/中心凹结构也不同,动物中的转导效率不能直接外推,临床需依赖衣壳工程(如 AAV2.7m8)、启动子优化与剂量爬坡。
三、临床实践:从患者筛选到给药与随访
把上述原理落到病床边,大致形成一条可操作的路径(见下图)。适合人群通常是 感光细胞已显著丧失、但内层视网膜结构相对保留的晚期患者;试验常要求极差的基线视力(例如 RESTORE 中研究眼 BCVA 差于约 1.9 LogMAR),并用 SD-OCT 评估神经节细胞层/神经纤维层等是否仍足以作为“生物接口”。2021 既往接受过其他眼部基因治疗、严重葡萄膜炎、明显影响中心视力的黄斑前膜/脱离、或已植入视网膜假体者,多被排除。
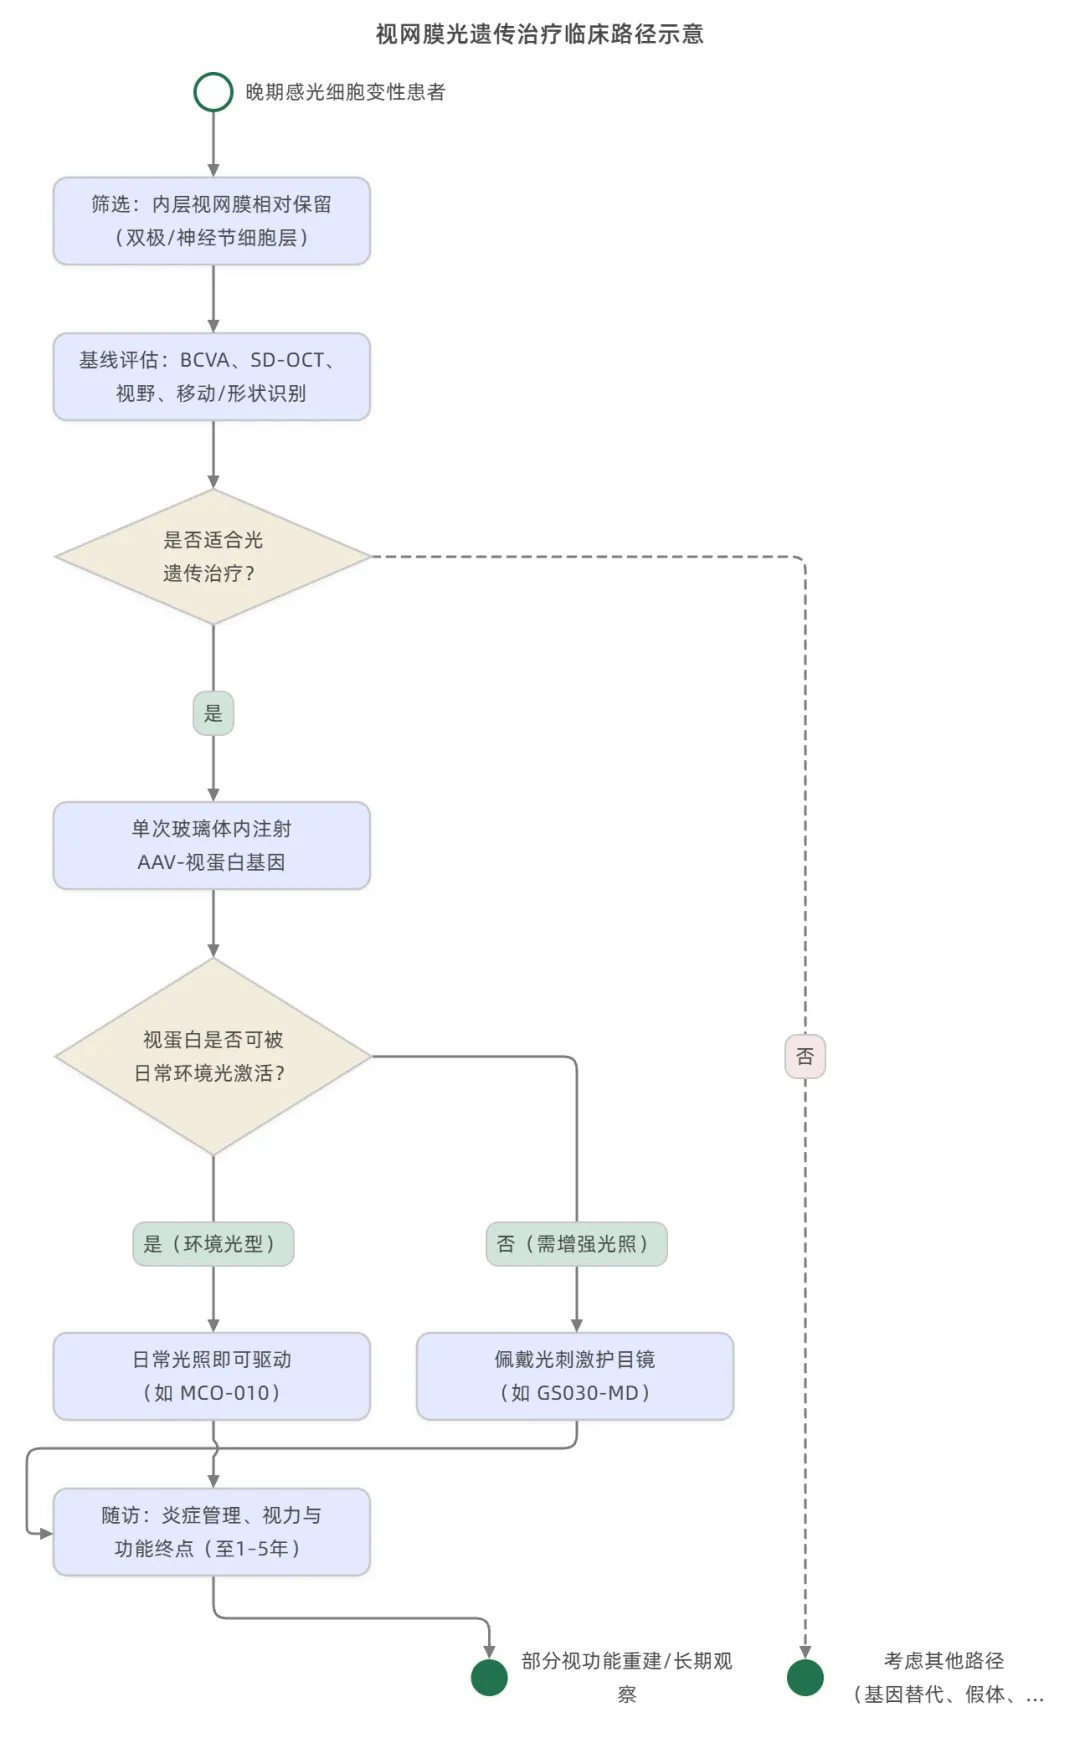
给药环节几乎都是 单次单眼玻璃体内注射载有视蛋白基因的 AAV 制剂,之后进入长达数月至数年的安全与功能随访。疗效终点不限于传统视力表:还包括全视野光敏阈值(FST)、多亮度移动/形状识别、门线任务、生活质量量表,以及护目镜“开/关”对照等,以区分真正的光遗传效应与安慰剂或学习效应。安全性焦点集中在 眼内炎症、眼压、免疫反应(抗 AAV 衣壳与抗视蛋白)、光毒性累积剂量;轻度前房/玻璃体炎症多可用皮质类固醇管理,但高滴度 AAV 与异源蛋白表达始终是需要长期监测的风险。
临床产品在“光如何到达被改造的细胞”上分出两条鲜明路线
路线 A:环境光可激活的高灵敏视蛋白,力求“只打针、不戴特殊眼镜”。 代表是 Nanoscope 的 MCO-010(sonpiretigene isteparvovec,申请商品名 MOGENRY)。MCO 为多亚基工程化合成视蛋白,经优化 AAV2 与启动子主要转导 ON 双极细胞;光照下通道开放、阳离子内流、细胞去极化,信号经视通路上传。公司披露其具有宽光谱、快开关动力学,可在环境光下工作,无需外置光增强设备。RESTORE(NCT04945772)为多中心、随机、双盲、假注射对照的 2b 期研究,约 27 例晚期 RP,高低剂量(约 0.9×10¹¹ 与 1.2×10¹¹ gc/eye)对比假注射,主要终点为第 52 周研究眼 BCVA(Freiburg/LogMAR)相对基线变化。2026 企业与后续报道称治疗臂相对对照达到主要终点,视力改善可超过约 0.3 LogMAR,并有长期随访显示获益可维持数年量级;BLA 已获 FDA 受理,同时拓展 Stargardt(STARLIGHT)等适应症。这类方案的临床实践更接近“一次门诊注射 + 常规低视力康复”,患者依从性路径相对简单,但监管与审评仍需核实可重复的功能获益与长期安全。
路线 B:微生物通道视紫红质 + 光编码护目镜的“基因—器械”组合。 代表是 GenSight 的 GS030:玻璃体注射编码红移 ChrimsonR 的 AAV(GS030-DP,常用衣壳方向为 rAAV2.7m8),再以可穿戴 GS030-MD 将场景影像编码为合适波长与强度的光脉冲,投射到被转导的 RGC。2130 PIONEER(NCT03326336)为开放、剂量爬坡 1/2a 期,纳入非综合征型 RP,剂量递增队列后可扩展;主要终点为 52 周安全性,次要终点涵盖 FrACT 视力、FST、视野、方块定位与运动方向、门/线移动任务及生活质量,并在护目镜开/关条件下比较。年同行评议报告显示,一名法定盲 RP 患者在治疗后配合护目镜,可获得物体定位与部分场景感知,成为人类光遗传治疗的重要概念验证。3230 该路径的临床实践要点是:注射只是上半程,下半程依赖设备调试、视觉训练与日常佩戴;优点是可用工程手段补偿视蛋白灵敏度不足并自定义刺激编码,负担则是器械依从性、光剂量管理与组合产品的监管复杂度。
同赛道还有:AbbVie/早期 Allergan 的 RST-001/AGN-151597(NCT02556736)已完成 1/2 期,登记信息提示疗效证据不足以按原计划扩大更好视力人群;Ray Therapeutics 的 RTx-015(NCT06460844)为 RP/脉络膜缺失症 1 期剂量爬坡;中国中牟生物 ZM-02 已在 RP 首次人体研究(NCT06292650,招募中),并规划随机对照 1/2 期剂量探索(NCT07282457)。整体上,视网膜光遗传是目前 唯一具有较清晰人体概念验证的光遗传治疗领域,但仍应理解为“部分视功能重建”,而非恢复天然高分辨率色觉与复杂场景理解;空间分辨率、对比敏感度、动态范围和长期稳定性仍是核心瓶颈。
四、听力等延伸实践:同一原理,不同器官接口
在耳蜗,传统电子人工耳蜗用电流刺激螺旋神经节神经元(SGN),但电流扩散使有效频率通道有限。光学人工耳蜗(oCI) 将通道视紫红质经 AAV 导入 SGN,再用多通道 LED/光阵列按频率位置给予光脉冲,以光的空间聚焦换取更细的频谱分辨率。937 动物研究显示,优化的快动力学 ChR 变体可在较低脉冲能量下支持较高刺激频率(小鼠听觉通路上可观测到逾 300 Hz 量级响应),沙鼠等更大耳蜗模型中单 LED 亦可驱动 ≥100 Hz 的通路响应;圆窗微导管给药等方案在提高可重复转导方面取得进展,但仍面临转导效率(有报告约 30% 量级)、毛细胞脱靶表达与长期安全等问题。目前总体处于临床前至临近临床,尚无与眼科同等成熟的人体有效性数据,但其“基因修饰神经元 + 光刺激假体”的产品形态,与 GS030 路线高度同构。
在帕金森病、癫痫、疼痛、成瘾及神经肌肉疾病中,光遗传更多仍是 环路因果解析与刺激规则发现工具,为深部脑刺激、闭环神经调控或药物靶点提供机制证据;中枢深部光照、长期植入生物相容性、非人灵长类递送效率等,使治疗性人体应用远慢于视网膜。心血管、内分泌或肿瘤等领域亦有探索,但距离常规临床实践更远,此处不展开。
三个人的工作构成了一条完整的接力链
“发现者”
-
格奥尔格·纳格尔(GEORG NAGEL)
-
彼得·黑格曼(PETER HEGEMANN )
这一切的起点,始于Hegemann一次充满好奇心的科研追问。彼时他将研究目光投向了自然界中最常见的单细胞绿藻——莱茵衣藻,想要厘清这类没有视觉器官的简单生物,究竟是凭借何种机制精准感知光源、定向游动的。
衣藻以其向光游动的能力而闻名。当研究人员将这种绿藻放入培养皿中时,液体会呈现出淡淡的绿色;若随后只对着培养皿的一侧照射,绿色会向光源方向偏移,因为这些微小的藻类会向光源游动。它们通过一种“眼点”感知光线,这是细胞表面一个微小的橙色斑点,内部搭载了一种捕获光线的分子——视黄醛。
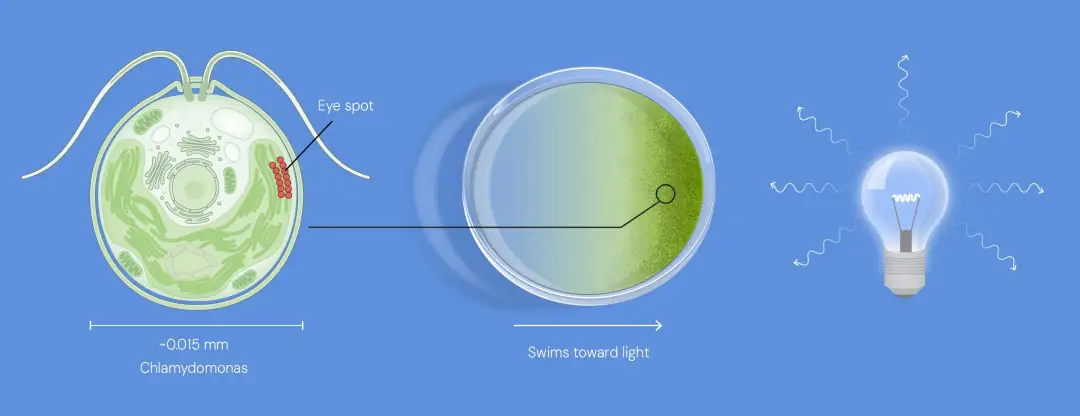
藻类衣藻利用其眼点感知光线。当光线强度足够强时,它会向光源方向游动。
© 诺贝尔生理学或医学奖委员会。插图:马蒂亚斯·卡伦
Hegemann对藻类的眼点进行了研究。他使用微型电极测量了衣藻在眼点被照射时产生的电信号。这种藻类细胞的反应速度极快,光线抵达眼点仅半毫秒后,便产生了一个电脉冲。与当时研究人员所知的其他生物系统相比,这一过程的速度堪称惊人。例如,光线抵达人眼后会触发一个包含多个不同步骤的复杂化学级联反应;该级联反应中的最后一个蛋白质——离子通道会在细胞表面形成一个开口,使带电离子得以通过,从而产生电信号。整个过程至少需要 10 毫秒。衣藻中对光的响应速度,为何能比人类眼睛快二十倍以上?
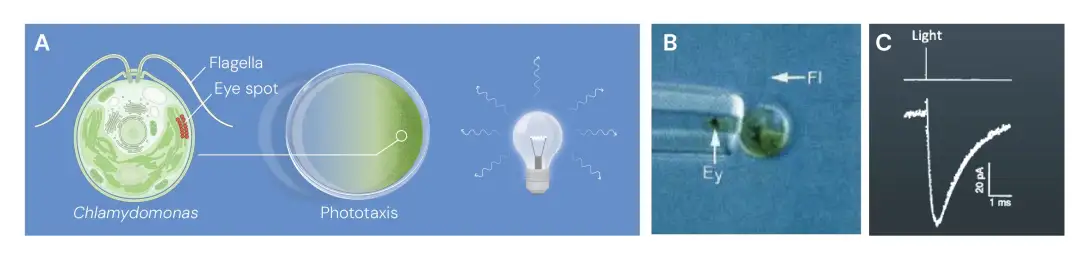
(A)莱茵衣藻中光诱导迁移(趋光性)示意图。(B)采用吸液吸管技术记录壁缺陷型莱茵衣藻突变体的光电流。Ey:眼斑;Fl:鞭毛。(C)莱茵衣藻中的快速光电流
© 诺贝尔生理学或医学奖委员会。插图:马蒂亚斯·卡伦
藻类中快速的光反应激发了Hegemann的好奇心
Hegemann对于这种超快响应仅能想到一种解释:这一过程在衣藻中的机制必然比在人类眼睛中简单得多。20 世纪 90 年代初,他提出了一个假说:单个蛋白质复合体既能捕获光线,又能充当离子通道。然而,这一提议遭到了质疑。彼时,研究人员已鉴定出多种亚型的离子通道,但其中没有任何一种离子通道能独立地对光产生反应。为验证其科学假设,Hegemann试图从衣藻中分离内源性光敏蛋白。这说起来容易做起来难,当藻类眼点中的蛋白质脱离其自然环境时,它们会变得不稳定且极易受损,难以开展后续的研究。但在世纪之交,该团队历经多年挫折后迎来重要突破契机:日本科研团队已绘制出衣藻的基因组图谱,并公开了数千个基因的遗传密码。Hegemann团队通过同源序列比对,发现了两个与已知光捕获蛋白基因高度同源的候选基因。这两个基因中是否都包含他们所寻找蛋白质的编码序列?为了解答这一问题,Hegemann联系了他的同事——位于法兰克福马克斯·普朗克生物物理学研究所的格奥尔格·纳格尔。后者掌握对应的膜蛋白功能研究体系,支撑团队迈出了后来彻底革新神经科学的关键一步。
Hegemann与Nagel发现了一种非凡的蛋白质
Nagel此前就一直采用青蛙的卵细胞来研究蛋白质。在获得衣藻的两个候选基因后,他将这些基因的拷贝分别注射到不同批次的青蛙卵细胞中,随后这些卵细胞便开始大量合成这两种未知蛋白质。这些蛋白质最终定位于卵细胞表面及其周围的细胞膜中。Nagel进而探究这些蛋白质的功能,迅速证实了 Hegemann十年前提出的假说:这两种新发现的蛋白质属于光门控离子通道,可在光照刺激下发生开放构象变化,二者随后被正式命名为通道视紫红质-1与通道视紫红质-2。我们将暂不考虑前者,而专注于后者——正是这一分子的成功鉴定,为光遗传学领域的建立奠定了核心基础。
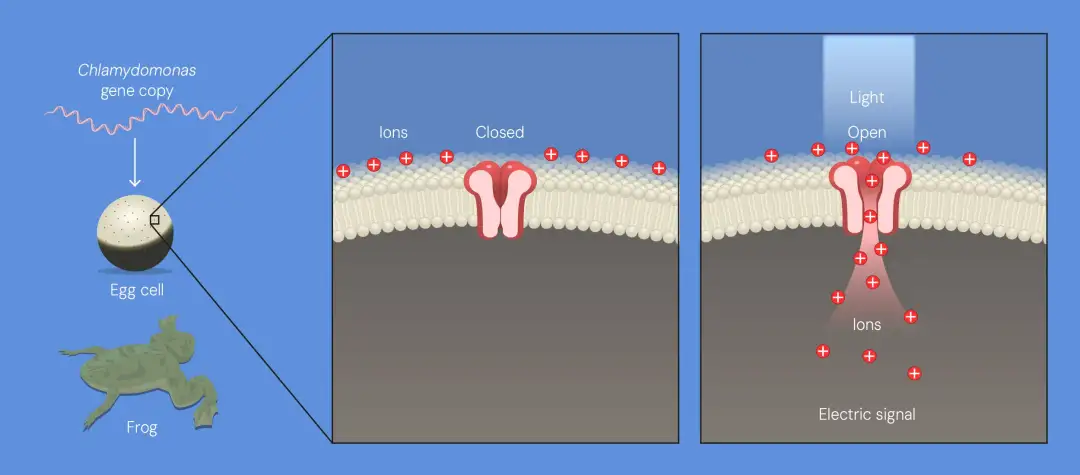
当 Nagel和 Hegemann将衣藻基因导入青蛙卵细胞后,他们开始产生最终定位于卵细胞表面的离子通道蛋白。当研究人员对这些离子通道进行光照时,通道随之开启。随后,离子通过这些通道流动,从而产生电信号。
© 诺贝尔生理学或医学奖委员会。插图:马蒂亚斯·卡伦
该藻类蛋白可激活人类细胞
与 Hegemann的实验结果一致,Nagel对通道视紫红质-2 的特性描述表明,该蛋白对光脉冲的反应异常强烈且迅速。在0.2毫秒内,通道便在青蛙卵细胞表面开启;随后,带正电荷的离子通过该通道流动,进而产生电信号。Hegemann与Nagel意识到,这是一项具备范式革新意义的重要发现。其后他们将通道视紫红质-2 基因分别导入人类胚胎肾细胞及仓鼠肾细胞中进行实验。结果显示两类原本无光响应特性的细胞均获得了光敏感性:当暴露于光线时,细胞可产生电信号。2003年,Hegemann与Nagel正式发表该系列研究成果。他们提出,通道视紫红质-2可作为一种强大工具,利用光在细胞内诱发电冲动。此后,斯坦福大学的一位年轻科学家接过了这一研究重任。
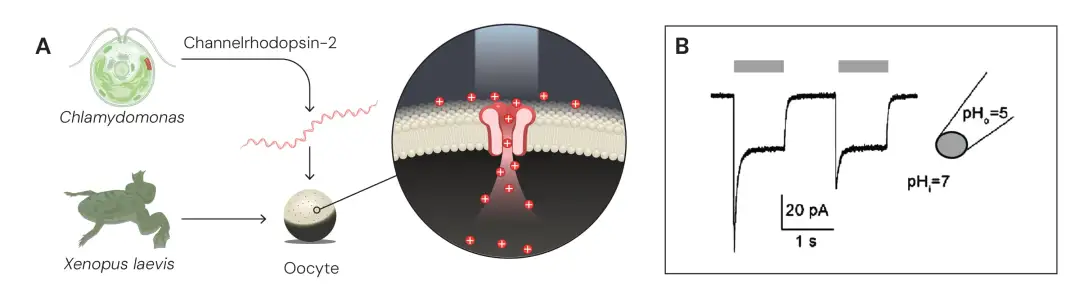
通道视紫红质-2 在非洲爪蟾卵母细胞中的异源表达。(A) 实验系统示意图。(B) 在存在全反式视黄醛条件下,卵母细胞膜片上由光脉冲(灰色条)诱发的光电流记录结果
© 诺贝尔生理学或医学奖委员会。插图:马蒂亚斯·卡伦
“转化者”
-
卡尔·戴瑟罗特(KARL DEISSEROTH)
20 世纪 90 年代,Deisseroth学医之初曾考虑成为一名神经外科医生,其部分培训是在一家精神科诊所完成的。在那里,Deisseroth深深被患者所承受的痛苦及其对救治的迫切渴望所震撼。这也促使他开始思考:为何不同个体的大脑运作机制竟存在如此显著的差异?为何抑郁症患者难以感受快乐?又是什么导致了自闭症或精神分裂症、妄想症的发生?攻读医学学位的同时,Deisseroth同步获得了神经科学博士学位。在实验室中,他以脑组织薄片为载体,在培养皿中对这些样本开展功能学检测。虽已取得重要成果,但随着研究推进,Deisseroth逐渐意识到:若要真正理解他在临床实践中遇到的疾病,必须突样本的研究局限,探究神经细胞在活体大脑中的功能机制。
成功将藻类蛋白转运至神经细胞
当Deisseroth搭建起自己的研究团队后,整个小组的核心目标就是找到一种可用于触发神经细胞电冲动的蛋白质。他们前前后后测试了众多候选蛋白,直到获悉通道视紫红质-2(channelrhodopsin-2)的发现时,Deisseroth主动致信Nagel,询问是否可获取编码该蛋白质的 DNA 序列。当样本送达实验室后,Deisseroth立即将其导入培养于培养皿中的大鼠神经细胞内。尽管他担忧这些敏感的神经细胞可能因外源基因而受到负面影响,但后续试验结果显示,这些细胞开始表达通道视紫红质-2,且未出现明显异常。当研究团队将神经细胞暴露于蓝光照射时,细胞立即产生反应:该光刺激诱发了神经信号传导,且该信号可进一步传递至其他神经细胞。2005年,Deisseroth的研究团队发表了他们的研究成果,成为该领域发展过程中一个决定性的里程碑。但Deisseroth深知,在抵达这一目标之前,他仍有很长的路要走——在活体动物体内调控神经细胞活性的能力。
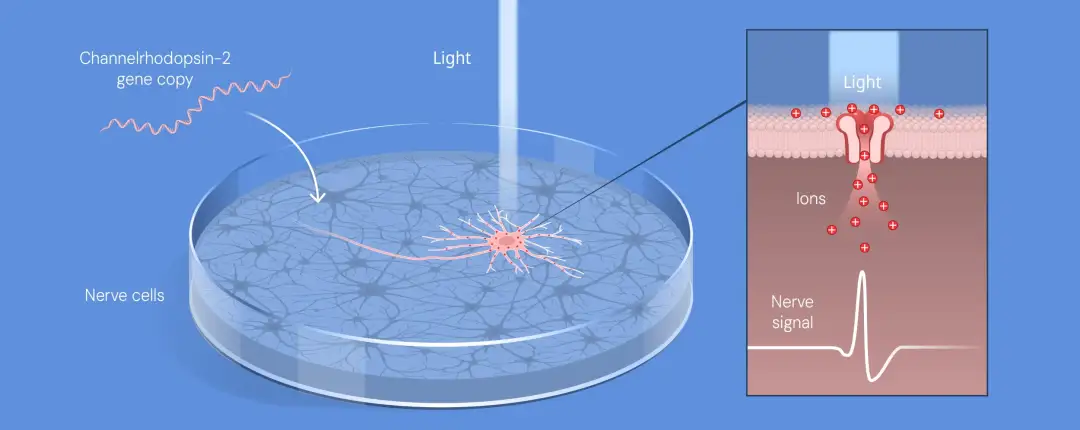
Deisseroth将编码通道视紫红质-2 的基因导入他在培养皿中培养的神经细胞内,使这些神经细胞对光产生敏感性。利用蓝光,研究人员成功诱发了快速的神经信号。
© 诺贝尔生理学或医学奖委员会。插图:马蒂亚斯·卡伦
活体大脑中神经细胞的光遗传学调控
此后Deisseroth主导开展了多项合作研究,其中即包括与Hegemann及Nagel的深度协同攻关。他还主动将核心细节分享给其他认识到该发现巨大潜力的研究人员。在Deisseroth实验室的带动下,科研人员很快发现了更多能够调控神经细胞活性、且可被不同波长光激活的蛋白质。2006年,这套基于光控蛋白的神经调控新方法被正式命名为“光遗传学”。一年后,Deisseroth成功激活了活体小鼠脑内的神经细胞。他的研究团队将通道视紫红质-2基因导入运动皮层中的特定神经细胞类型——该脑区承担着调控躯体运动输出的核心功能。随后,他们通过颅骨上的小孔将细光纤引入脑内,用该光纤对神经细胞进行光刺激。最终通过光信号实现了对小鼠触须运动行为的人为调控。
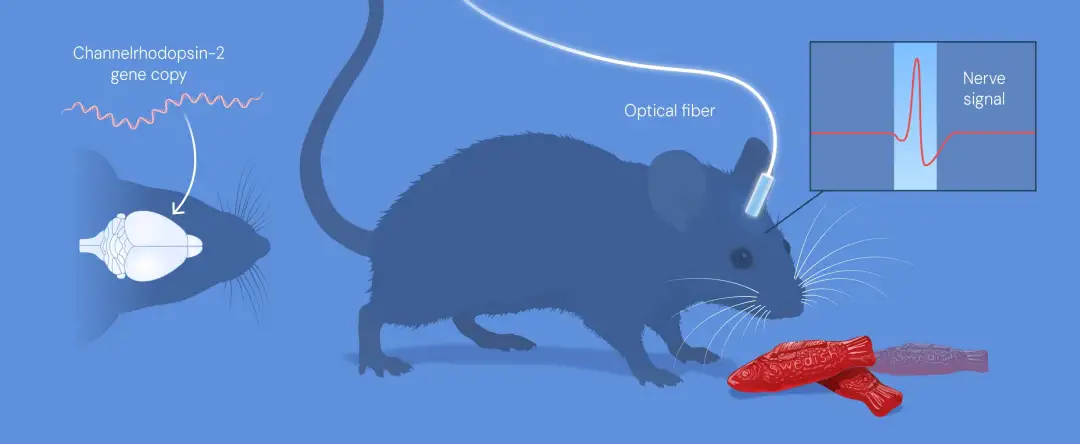
Deisseroth研究团队将通道视紫红质-2 的基因递送至活体小鼠的大脑中,随后将一根细光纤插入大脑。当他们通过该光纤照射神经细胞时,会触发神经信号,进而诱导触须产生运动。
© 诺贝尔生理学或医学奖委员会。插图:马蒂亚斯·卡伦
同年,Deisseroth与其他研究人员合作,利用光遗传学技术实现了以可控方式唤醒处于睡眠状态的小鼠。团队将通道视紫红质-2 导入一种新近发现的神经细胞类型中,他们推测,这类细胞就是调控小鼠觉醒状态的关键。当他们对这些神经细胞施以光照时,处于自然睡眠状态的小鼠随即苏醒,从而证实了这一假说。2012年,光遗传学领域又一项里程碑式研究成果发表:Deisseroth与利根川进(1987年诺贝尔免疫学奖获得者)合作,成功激活了“记忆印迹”——即记忆形成时形成的特定神经通路组合。研究人员在观察小鼠建立恐惧条件反射的过程中,系统记录了哪些神经细胞似乎参与了该记忆的形成。随后,当这些神经细胞被重新激活时,尽管小鼠当时并未处于危险环境中,它们仍表现出恐惧反应。这项实验首次证实,研究人员能够精准识别出对特定记忆形成至关重要的神经细胞。
这一结论直接突破了当时神经科学领域的技术瓶颈,为后续用光精准操控特定神经细胞活动的光遗传学体系,埋下了最关键的分子伏笔。
神经科学的新纪元
激活大脑中特定类型神经细胞的能力,从根本上改变了我们对这一非凡器官的认知。成人大脑约含900亿个神经细胞,每个神经细胞均与其他神经细胞形成数千个连接通路。在许多情况下,单个神经细胞的信号传导路径可延伸至大脑中完全不同的区域;而负责截然不同生理功能的神经细胞,却可能紧密交织共存。
得益于光遗传学技术,研究人员如今能够精准识别复杂神经束中哪些神经细胞调控不同的脑功能。例如,他们已鉴定出调控疼痛感知、社会行为、口渴稳态、摄食行为、奖赏效应及注意力维持的神经环路;同时还发现了承担多种功能的神经细胞,从调控昼夜节律,到在免疫系统激活时引发发热反应。当研究人员进一步研究更复杂的行为——例如小鼠如何照料幼崽时,他们发现,某种行为的各个组成部分可由不同的神经回路分别调控。譬如,一个神经回路负责调控小鼠如何将幼崽聚集到巢穴中,而另一个神经回路则负责调控它们为幼崽进行理毛的行为。光遗传学技术还可用于绘制大脑以外区域的神经系统及细胞功能图谱。Deisseroth团队基于光遗传操控证实,心脏节律可影响人类情绪;若心脏被迫加强工作负荷,则可能加剧焦虑情绪。其他研究人员借助该技术在肠道中鉴定出特定细胞类型,可解释为何部分个体更倾向于摄入糖类而非甜味剂——此仅为众多例证中的少数代表。
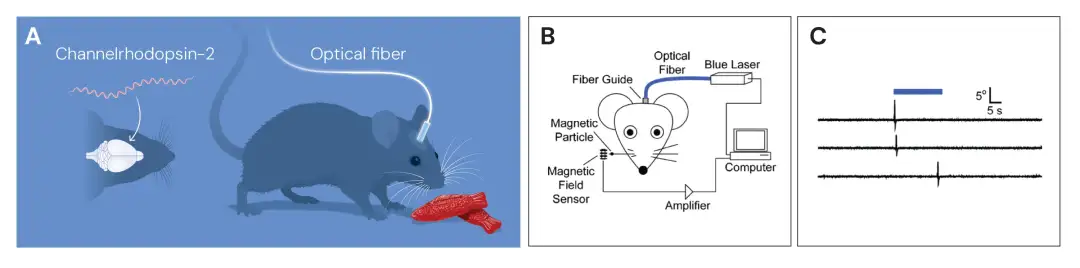
利用光调控动物行为的体内光遗传学研究。(A) 通过病毒载体递送的通道视紫红质-2 可由光纤传输的光激活。(B) 用于检测啮齿类动物触须系统中桶状皮层激活的触须偏转实验。(C) 小鼠体内光刺激(蓝色条)诱发的触须偏转现象
© 诺贝尔生理学或医学奖委员会。插图:马蒂亚斯·卡伦
对新型医疗疗法的期待
靠着光遗传学技术攒下的海量神经科学新知识,人们曾经畅想的全新精准疗法,而今不再是纸上谈兵,这个原本遥远的愿景已开始逐步成为现实。该技术深化了我们对抑郁症、焦虑症、精神分裂症、阿尔茨海默病及帕金森病等精神与神经系统疾病特征性表现的认知。
如今科研人员已经跨过了基础研究和临床应用之间的关键门槛,将光遗传学技术应用于医学治疗领域。目前正在推进的临床试验里,他们致力于为因视网膜色素变性(一种破坏眼内视杆细胞与视锥细胞的疾病)而失明的患者恢复视力。当在失明患者的视网膜中植入一种通道视紫红质样蛋白后,受试者重新获得了部分视力。在配套可发射光线的特制眼镜的辅助下,该患者已能准确识别出桌面上的物体,并且伸手完成抓取动作。
人们也期待光遗传学技术能够优化耳蜗植入物的性能。当前临床应用的人工耳蜗通过电刺激来激活听神经;电信号容易在组织中扩散,刺激精度受限;若引入光遗传学技术对听神经进行改造,或许可以更高的精准度激活听神经。
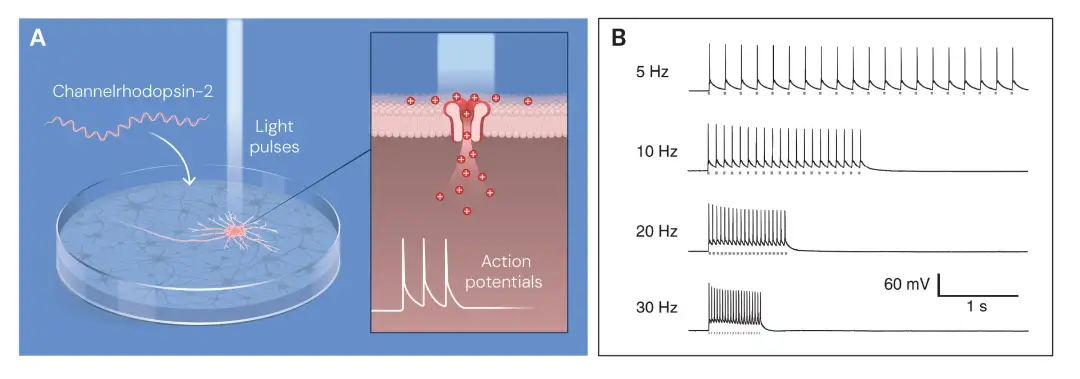
利用光实现神经元动作电位的光遗传学调控。(A) 实验系统示意图。(B) 随着光脉冲频率增加而诱发的动作电位序列
© 诺贝尔生理学或医学奖委员会。插图:马蒂亚斯·卡伦
2026年诺奖的颁发,标志着光遗传学从“实验室工具”正式迈向了“临床疗法”的起点。这不仅是荣誉,更是一个明确的信号:用光线精准调控细胞活动的全新时代,正从基础研究层面稳步走向临床医学的实际应用场景。诺奖的背书也意味着该领域的技术积累已足够坚实,具备了全面推进临床转化的核心条件。
结语
从绿藻身上偶然发现的那道“光控离子通道”,最终成了人类叩开大脑黑箱的钥匙。2026年的诺奖,更像一束照亮前路的光,接过了神经科学百年探索的接力棒,把看清大脑的旧目标,升级成了温和干预大脑的新使命。人类对大脑的探索,本质上也是一场对自我的溯源之旅。光遗传学没有用生硬的电极去惊扰神经的律动,借由一束柔和的光,在细胞层面搭起了意识与生理对话的桥梁。它的动人之处,不止于实验室里的精准操控,更在于让无数被神经和精神疾病困住的人,看见了精准治愈的可能。从视网膜上重新找回的光影,到帕金森患者重新抬起的手臂,再到被精准抚平的创伤记忆,我们终于不再是隔着毛玻璃观察大脑的旁观者。光遗传学握着一束温和的光,轻轻拨开横亘在心灵与身体之间那层尘封已久的迷雾,在毫秒级的精度里,为每一个独特的生命找回属于自己的节奏与安宁。这条从绿藻出发、最终指向人类生命健康的路,终会在未来铺展出一个神经调控的全新纪元,让那些被病痛禁锢的生命,都能在光的轻抚下,重新找回自由感知世界、从容掌控生活的能力。
“因其关于光门控离子通道与光遗传学的发现”
2026年度诺贝尔生理学或医学奖